

在高浓度下,活性氧 (ROS) 会引发基因程序性细胞自杀。 然而,它们作为信号转导级联中的次级信使也具有重要功能,可调节植物的许多生理和发育过程。 植物中存在多种形式的 ROS,包括超氧自由基 (O2–), 单线态氧 (1O2), 羟基自由基 (OH*) 和过氧化氢 (H2O2。 H2O2 与其他 ROS 物种相比具有弱毒性,但它可以触发高反应性羟基自由基,并且 H 的寿命相对较长2O2 使其对细胞器有害。
植物具有复杂的抗氧化系统来维持 ROS 的稳态。 一般来说,该系统可分为酶促和非酶促 ROS 清除机制。 超氧化物歧化酶 (SOD)、过氧化氢酶 (CAT) 和过氧化物酶这三种抗氧化酶在保持超氧自由基和 H2O2 在稳态水平。 植物中有两类过氧化物酶:I 类和 III 类。 III 类过氧化物酶由一个大的多基因家族编码——总共有 73 个成员已在 拟南芥(Arabidopsis thaliana). 虽然它们通过去除活性氧发挥抗氧化作用,但它们也会产生活性氧。
PA 是类黄酮生物合成途径的主要终产物,主要积累在 拟南芥. 由于类黄酮色素沉着和积累减少,PA 缺陷型突变体呈现黄色或浅棕色种皮颜色。 新研究发表于 Annals of Botany 表明 PA 缺陷型突变种子种皮中 III 类过氧化物酶活性的增加可以补偿 PA 的损失,这可能是一种适应性机制,可替代种子发育过程中和种子后期所需的 PA 的抗氧化功能发芽。
III 类过氧化物酶在原花青素缺乏的拟南芥种子中被激活。 (2013) Annals of Botany 111(5):839 847。
DOI:10.1093/aob/mct045
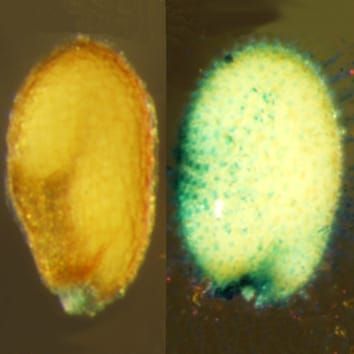
先前已经表明,种皮中的原花青素 (PA) 拟南芥(Arabidopsis thaliana) 具有清除超氧自由基(O2–). 然而,PA 缺陷种子的生理过程尚不清楚。 据推测,缺乏 PA 的种子存在应对氧化应激的替代方法。 过氧化氢含量(H2O2) 及其与超氧化物歧化酶 (SOD)、过氧化氢酶 (CAT) 和过氧化物酶活性的相关性在野生型和 PA 缺陷突变体种子中进行了研究。 生化染色方法用于检测 PA 缺陷突变体种子中过氧化物酶活性的组织定位。 PA 缺陷型突变体的 H2O2 水平明显低于野生型,尽管它们的超氧自由基积累较高。 关键抗氧化酶的筛选表明,过氧化物酶活性在突变种子中显着过度激活。 这种高过氧化物酶活性主要局限于种皮区。 有趣的是,无论是抗坏血酸过氧化物酶还是谷胱甘肽过氧化物酶,只有愈创木酚过氧化物酶(III 类过氧化物酶)在种皮中都没有被特异性激活。 然而,在突变体或野生型的胚胎中没有观察到过氧化物酶活性的显着差异,尽管几种候选过氧化物酶的基因表达在 PA 缺陷种子的胚胎中被下调。 结果表明,增强 PA 缺陷突变体种皮中的 III 类过氧化物酶活性是种子发育和存活的适应性策略。