遗传分化是如何开始的? Shota Sakaguchi 及其同事一直在研究 矮黄花的遗传学. 研究小组将屋久岛的矮黄花与其低地亲属进行了比较。 植物高度和繁殖力往往与植物高度相关,因此矮小种群应该比高矮种群经历更多种群间的遗传漂移。
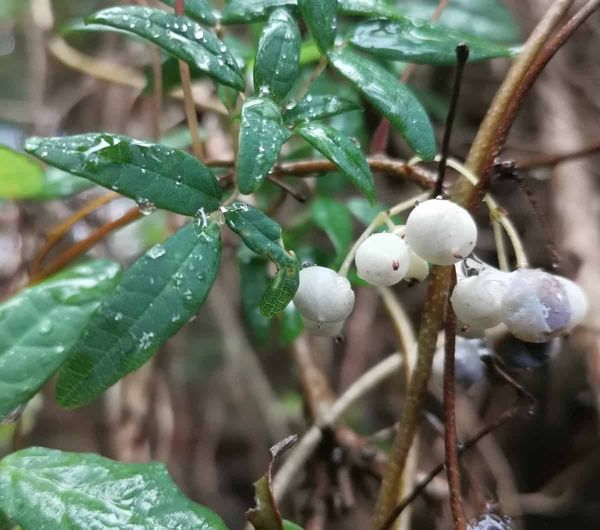
为了查明一枝黄花是否属于这种情况,植物学家团队收集了 一枝黄花 从海拔 1700 米左右及以上的位置。 极细小海棠 是一种小植物,只有几厘米高。 然后他们对人口进行了抽样 S. virgaurea, 那个物种 极细小海棠 演变自。 亲本物种是一个比较大的巨人,高度超过十倍。

Sakaguchi 及其同事分析了叶绿体、核微卫星和双酶切限制位点相关 DNA。 “基于三种分子标记的遗传分析一致揭示了高山矮人和低地一枝黄花种群之间的明显差异。 种群之间没有共享叶绿体单倍型,并且根据核微卫星和 SNP 分析,每个高山和低地种群的个体分别聚类,除了一个种群 L5,显示基于核微卫星的“混合”起源, ”作者在他们的文章中写道。
“这一发现与之前报道的其他山脉高山 S. virgaurea 种群的种群动态形成对比,后者反复显示与低地种群的遗传差异很小。”
作者指出,在景观遗传学理论中,景观多样性会影响基因流动,从而导致遗传分布的差异。屋久岛的高山景观形成了多种微生境。“矮生金光菊种群中遗传变异与生境类型之间的明显关联,或许可以用这样一种情景来解释:基因流动主要通过选择作用将相似环境中的种群联系起来,从而淘汰那些从其他生境迁移而来的不适应环境的个体……然而,事实上,我们发现即使在相邻的湿地生境之间也存在很强的种群隔离,这体现在不同叶绿体单倍型的完全固定以及相似生境类型中不同遗传簇的优势地位。”
Sakaguchi 及其同事建议使用移植和普通花园实验来分离影响中性过程,例如基因流动和自然选择在分化种群中的作用。
这篇论文是 在 ResearchGate 上市.